Архив автора

Облака состоят из очень мелких капель воды или плавающих в воздухе кристаллов льда. Эти капельки и кристаллики настолько малы, что под действием силы тяжести они лишь медленно опускаются вниз.

Их можно сравнить с плавающими в воздухе мельчайшими пылинками, которые мы видим в ярком солнечном луче, проникающем в окно полутемной комнаты.

Когда облачные капли и кристаллы увеличиваются в размере и становятся тяжелее, то они начинают падать скорее и из облака выпадает дождь или снег.

При температуре выше 0° облако состоит, конечно, только из капель воды: лед при такой температуре тает. В очень холодном воздухе облако обычно состоит из одних ледяных кристаллов без капель воды.

Однако при слабом морозе облако может состоять из смеси капель воды и кристаллов льда: именно из таких облаков обычно и выпадают осадки.

Во всяком облаке водяной пар находится в насыщенном состоянии, т. е. пространство в пределах облака содержит наибольшее количество водяного пара, которое возможно при данной температуре.

Если бы этого не было, то капли, из которых состоит облако, немедленно бы испарились и облако растаяло.

Что же происходит в облаке, состоящем из одних водяных капель, если в него по каким-то причинам попадают ледяные кристаллы? Благодаря свойству льда притягивать к себе влагу ледяные кристаллы начинают расти, количество водяного пара в облаке уменьшается, воздух перестает быть насыщенным, а водяные капли начинают испаряться. Таким образом, кристаллы постепенно растут за счет уменьшения капель и превращаются в снежинки. Выросшие снежинки выпадают из облака, начинается снегопад.

Казалось бы, что такой процесс может вызвать выпадение только снега и никак не объясняет выпадение дождя. Однако это не так. В тропосфере температура с высотой понижается, и даже в самый жаркий день на высоте нескольких километров над Землей царит мороз. Поэтому почти всякий летний дождь ( сначала возникает наверху как снег, и только потом, падая и попадая в нижние теплые слои, снежинки тают и достигают поверхности Земли уже в виде дождевых капель.

Воздушные массы приносят потепления и похолодания

Как мы уже знаем, в наших широтах и в полярных странах воздух громадными потоками (часто до тысячи километров в поперечнике) непрерывно движется вокруг центров циклонов и антициклонов.

Эти воздушные течения и приносят нам тепло или холод из тех стран, откуда они движутся.

Неожиданное потепление вызывается приходом теплой воздушной массы, которая движется из теплых районов в более холодные. Теплая воздушная масса, переходя в более холодные области, оказывается гораздо теплее земной поверхности, над которой. она движется. От соприкосновения с этой поверхностью воздушная масса снизу непрерывно охлаждается. Иногда прилегающие к земле воздушные слои могут оказаться даже холоднее верхних слоев.

Охлаждение теплой воздушной массы, идущее снизу от Земли, вызывает конденсацию водяного пара в самых нижних слоях воздуха, и в результате этою образуются облака и выпадают осадки. Облака эти располагаются невысоко. Они часто опускаются до Земли и переходят в сплошные туманы.

Толщина облачного слоя невелика: обычно она не превышает нескольких сотен метров.

В нижних слоях теплой воздушной массы во все сезоны года достаточно тепло (зимой она приносит нам оттепели), и ледяных кристаллов здесь обычно не бывает. Поэтому низкие облака теплой воздушной массы состоят обычно из одних водяных капель и не могут давать сильных осадков.

Как образуются дождь и снег
Иногда лишь выпадает мелкий, моросящий дождь, даже не смачивающий крыши домов.

Облака теплой воздушной массы ровным или слегка волнистым сплошным покровом заволакивают все небо и тянутся на сотни и тысячи километров. Они называются слоистыми (если они ровные) или слоисто-кучевыми (если они волнистые).

Полную противоположность теплой воздушной массе представляет холодная воздушная масса. Она движется из холодных районов в теплые и приносит похолодание. Переходя на более теплую земную поверхность, холодная воздушная масса непрерывно нагревается снизу. При нагревании не только не происходит конденсации, но даже образовавшиеся уже облака и туманы должны испаряться. Однако небо не становится безоблачным, только облака с этом случае образуются совсем по другим причинам, чем в теплой воздушной массе. Вспомните, что происходит с водой в сосуде, когда ее ставят на огонь. Со дна сосуда поднимаются струйки теплой, а на дно опускаются струйки холодной воды. Нечто подобное происходит и в холодной воздушной массе, нагревающейся от теплой земной поверхности. Кроме того, при нагревании все тела расширяются и плотность их уменьшается. Когда самый нижний слой воздуха нагревается и расширяется, то он становится более легким и как бы всплывает в виде отдельных пузырей или струй. На его место опускаются более тяжелые слои холодного воздуха.

Как образуются дождь и снег
Воздух, как и всякий газ, при сжатии нагревается, а при расширении охлаждается. Когда воздух поднимается, то он попадает в условия более слабого давления, так как атмосферное давление с высотой становится слабее. В этих условиях воздух должен расширяться, а следовательно, и охлаждаться. Температура его становится на 1° ниже через каждые 100 м подъема. По мере того как воздух поднимается все выше и выше, он становится все холоднее, пока, наконец, на некоторой определенной высоте в нем не начнется конденсация и образование облаков.

Опускающиеся струи воздуха попадают в слой с более сильным давлением и от сжатия нагреваются. В них не только не происходит никакой конденсации, но даже испаряются и рассеиваются те части облаков, которые были увлечены этим нисходящим потоком.

Как образуются дождь и снег
Поэтому облака холодных воздушных масс представляют собой нагромождающиеся в высоту изолированные клубы, или «кучи», облаков с просветами между ними. Такие облака называются кучевыми, или кучево-дождевыми. Облака холодной воздушной массы во всем противоположны облакам теплой воздушной массы. Они никогда не опускаются до Земли и не переходят в туманы, а толщина их от основания до вершины может быть очень большой — до 5—8 км. Эти облака редко закрывают весь видимый небосвод, и между ними обычно бывают просветы голубого неба.

Такие облака пронизывают снизу вверх много слоев атмосферы. Восходящие потоки воздуха увлекают за собой водяные капли в те высокие холодные слои, в которых всегда имеются тонкие ледяные кристаллики. Как только облако вырастает до слоя с ледяными кристаллами, вершина его сразу начинает затуманиваться, теряет свою характерную форму «цветной капусты» и облако превращается в кучево-дождевое. С этого момента из облака начнут бурно выпадать осадки — сильные летние ливни и обильные зимние снегопады.

Летом такие ливни часто сопровождаются грозой и градом, а осенью и весной из кучево-дождевых облаков иногда выпадает крупа — ледяные шарики, более мелкие, чем градины. Осадки холодной воздушной массы хотя и сильные, но продолжаются недолго, потому что кучево-дождевое облако сплошь закрывает небо только на небольшом пространстве; оно быстро переносится ветром, и вскоре небо проясняется. Поэтому погода в холодной воздушной массе очень неустойчива: то выпадает сильный дождь или обильный снег, то светит яркое солнце.

Малый скворец — житель Дальнего Востока. Он и в самом деле невелик, зато отменно пригож.

Другой на ДальнемВесит всего сорок граммов — чуть больше домового воробья и в 2,5 раза меньше обыкновенного скворца.
 Ни тот, ни другой на Дальнем Востоке не водятся, но малый скворец с успехом замещает обоих. Гнездится он исключительно в сельской местности, в небольших поселках.
По способу гнездованияПо способу гнездования напоминает воробья. Гнезда малого скворца чаще оказываются за наличниками окон и под застрехами крыш, чем в скворечниках или естественных дуплах.
По способу гнездования напоминаетВ природных ландшафтах в пору гнездования он почти не встречается, оставив их в пользование конкуренту — серому скворцу.



Малый скворец
  • В кладке малого скворца 5-6 яичек ярко-голубого цвета. В конце июня встречаются первые птенцы, покинувшие гнезда, а в августе скворцы начинают перелет к местам зимовок в юго-западной части Индокитая и на островах Малайского архипелага.

Часто рыбам приписывают исключительную сообразительность. Рассказывают «охотничьи истории» о щуках и язях, умеющих открывать крышки садков. О лещах, которые, поднявшись по лесе на поверхность воды и увидев рыболова, сразу же исчезают в глубине. Об «умных» сазанах, — собьет такой умник хвостом насадку с крючка и спокойно лакомится ею. О «хитрых» окунях, отгоняющих своих менее сообразительных товарищей от крючка.

Большинство этих историй — плод воображения рассказывающих, но есть примеры, которые как будто подтверждают осмысленные действия рыб.

Разве не кажутся нам умными длительные путешествия лососей в поисках нерестилищ? Или наблюдаемая у колюшки защита потомства? Или способ, которым добывает пищу брызгун? Эта рыбка, выпуская изо рта струю воды, сбивает с деревьев, окружающих водоем, насекомых и схватывает их при падении.

Умным представляется нам и поведение рыб, остерегающихся сетных ловушек, толстых и грубых лес рыболовов. Как же объяснить эти «умные» поступки рыб? Оказывается, это уже объяснено, и не кем другим, как великим русским физиологом И. П. Павловым.

В результате многих экспериментов и наблюдении И. П. Павлов обнаружил, что всем животным присущи два рода деятельности: безусловно-рефлекторная и деятельность, связанная с условными рефлексами. Безусловно-рефлекторная деятельность заложена у животных «от роду», она вырабатывалась в течение долгого времени и на многих поколениях и состоит из цепи инстинктивных реакций организма на происходящие вокруг изменения:

Первостепенную роль в жизни животных, в том числе, конечно, и рыб, играет пищевой рефлекс.

Пищевые реакции рыб очень разнообразны. Хищные рыбы питаются живой добычей, их особенно привлекают движения жертвы. Попробуйте на дне аквариума с окунями поместить мертвого мотыля, окуни не обратят на него никакого внимания. Но стоит бросить в аквариум живого мотыля, как рыбки устремятся к добыче всей Стайкой, причем мотыль достанется самому проворному.

Не менее показательно отношение хищников к искусственным приманкам — блеснам. На неподвижную блесну не польстится ни один хищник, а самой уловистой окажется та, которая, двигаясь, наиболее полно повторит водные колебания, создаваемые живой рыбкой.

Хищники обращают внимание и на положение жертвы. В некоторых водоемах щука схватывает посаженную на крючок мертвую рыбку. Однако щука никогда не схватит рыбку, если та плавает брюшком кверху или лежит боком на дне. Поэтому опытные рыболовы перед насаживанием мертвой рыбки на крючок вводят ей в брюшко через рот продолговатый кусочек свинца. Тогда рыбка при ловле на кружки или на жерлицы будет занимать в воде правильное горизонтальное положение брюшком книзу.

У мирных рыб сигналом «пища» служит не только вид предмета, но и издаваемый им запах.

В течение многих поколений у рыб выработались и наиболее целесообразные способы охоты. Щука, окунь мало заметны среди водных растений, и обычно они охотятся из засады. Быстро плавающие рыбы — тунец, лосось- приспособились догонять добычу. Брызгун свой удивительный способ охоты за насекомыми тоже унаследовал от предков.

Очень важна для сохранения вида цепь врожденных рефлексов, связанных с заботой о потомстве. Все рыбы инстинктивно мечут икру в таких условиях, при которых она лучше всего развивается. Поэтому одни рыбы нерестятся в тиховодье, другие на быстринах, а третьи совершают в поисках удобных нерестилищ длительные путешествия.

Черный паку (Colossoma brachypomum). Владивостокский океанариум, Фото фотография
Черный паку (Colossoma brachypomum)

У некоторых рыб забота о потомстве идет еще дальше: лососи перед нерестом прогоняют с нерестилищ всякую рыбу, а затем зарывают икру в песок и гальку. Сомы охраняют икру вплоть до выклева мальков, а самец колюшки строит для икры особое гнездо и первое время сторожит мальков.

Однако родительский инстинкт у рыб сохраняется недолго. Даже такой заботливый папаша, как самец колюшки, как только мальки начинают самостоятельно питаться, становится к ним равнодушным. Более того, при случае он не откажется полакомиться собственными детьми, как и всякой другой движущейся добычей. Так, раньше или позднее, поступает большинство рыб, особенно в неволе, где свобода ограничена стеклом аквариума. Поэтому опытные аквариумисты следят за рыбами и, как только начнет угасать родительский инстинкт, отсаживают отца и мать. При разведении живородящих рыбок в аквариуме мальков нужно вылавливать немедленно, иначе они все могут быть проглочены матерью.

Стремление животных к свободе тоже безусловный рефлекс. Пойманный в западню зверь, попавшаяся в силок птица, запутавшаяся в сетях рыба прилагают все усилия, чтобы освободиться.

Рефлекс свободы очень силен. Птица, очутившаяся в клетке, или рыба, только что посаженная в аквариум, часто отказываются от пищи и иногда даже погибают от голода. Не следует, конечно, думать, что животные скучают в неволе и погибают от «тоски по свободе». Животные не люди, и очеловечивать их поступки не следует. Просто в этих случаях рефлекс свободы оказывается сильнее пищевого.

Большую роль в жизни животных играет оборонительный рефлекс. Рыбы боятся не только явных врагов, но и подозрительно относятся ко всяким незнакомым предметам. Их может пугать и вид предмета, и произведенный им шум, и его запах, и даже тень, падающая от него на воду. У различных видов рыб осторожность развита не одинаково. К наиболее осторожным из наших рыб следует отнести сазана, леща, форель, к наименее — окуня, налима, щуку.

И грозные кинжалы. Колюшка, защищая свое гнездо, колет врагов иглами. Рыбы с «электростанциями» при малейшей опасности приводят их в действие. Сразу же бросаются в атаку, если их потревожат, самцы бойцовой рыбки. С ожесточением дерутся они и друг с другом. В Сиаме бойцовых рыбок специально дрессируют для публичных боев. Многочисленные зрители заключают, как на скачках, пари и награждают победителя шумными аплодисментами.

Избежать опасности животным помогает также и исследовательский рефлекс, или рефлекс «Что это такое?»

В чем же его сущность? Всякое животное, попав в незнакомую обстановку или завидев незнакомый предмет, приглядывается, прислушивается, принюхивается, стараясь определить, не грозит ли ему какая-нибудь опасность. Но не приблизившись к незнакомому предмету, не узнаешь, что можно от него ждать, И животное, преодолевая страх, пытается выяснить положение.

Именно учитывая этот инстинкт животных, Майн-Рид в одном из своих романов рассказал о следующем случае. У охотника кончались продукты, а ему еще предстоял длительный путь через прерии. На рассвете он заметил стадо антилоп. Как подобраться к сторожким животным, если кругом нет ни одного укрытия? И охотник нашел выход. Приблизившись к антилопам на такое расстояние, чтобы они его заметили, он опустился на руки, а ногами стал выделывать в воздухе замысловатые пируэты. Это необычное зрелище привлекло внимание животных, антилопы стали медленно приближаться к охотнику, Когда они оказались на расстоянии выстрела, охотник вскочил, схватил с земли ружье и застрелил ближайшую антилопу.

Так же поступают и рыбы. Каждому спиннингисту приходилось наблюдать, как за блесной устремляются рыбешки значительно меньше самой приманки. Это проявление исследовательского рефлекса. Возможно, что и скопление некоторых рыб у опущенной под воду электрической лампочки также является проявлением этого инстинкта.

Не исключено, что подход многих рыб на звук объясняется не пищевым, а тоже исследовательским рефлексом, который, после того как рыба обнаружила добычу, переходит в пищевой.

Важными для дальнейшего изложения являются также полученные В. И.Молчановым (1981) экспериментальные результаты по вытеснению водорода из воды уже при комнатной температуре природными соединениями двухвалентного железа (с образованием магнетита) при активации их посредством тонкого измельчения.

Таким образом, при стресс-сдвиговом метаморфизме масштаб дифференциации может увеличиваться с первых сантиметров до сотен метров, и становится возможным разложение железосодержащих силикатов с образованием магнетита. Как обсуждалось ранее, именно такие условия тектонического течения были реализованы на временном интервале, соответствующем возрасту ПЖФ Кольского полуострова.

6. Численное моделирование метаморфогенного образования железистых кварцитов

Простейшая модель этого процесса представлена на рис. 8: в зонах прохождения флюидного потока происходит окисление железа с образованием магнетита (который в силу высокой прочности и плотности будет в условиях стесненного сдвига наиболее стабильным); соответственно, образуется недостаток двухвалентного железа, которое начинает диффундировать из окружающих активную зону участков; все остальные породообразующие элементы в соответствии с балансом масс вытесняются и выносятся. Плагиоклаз, как типичный антистресс-минерал (Чиков, 1992) разрушается интенсивнее, чем пироксены и амфиболы, при этом алюминий, как наиболее инертный элемент в метаморфо-метасоматическом процессе, откладывается в непосредственной близости от образующихся рудных тел, образуя алюмосиликатные гнейсы, обрамляющие линзы железистых кварцитов. При этом флюид рассматривается не как транспортный агент (предполагается твердофазовый процесс в АВС вещества), а как окислитель железосодержащих минералов.

При численном моделировании (Егоров, 1999) стресс-сдвигового метаморфизма высокожелезистого амфиболита с принимаемым рядом относительной подвижности: Fe3 ® Ca, Mg ® Al ® K, Na достаточно легко получаются профили распределения породообразующих элементов, соответствующие реально наблюдаемому петрографическому тренду (рис. 9).

Тем не менее, модель эта не объясняет всех реалий процесса. В зоне тектонического течения вещества с атом-вакансионным (твердоплазменным) его состоянием флюидный поток будет, по-видимому, заполнять все пространство, вовлеченное в тектоническое течение. Возникает вопрос, за счет каких эффектов в этом случае возможна сегрегация рудных тел?

Такая модель может быть построена в рамках нового междисциплинарного научного направления “синергетика” (Хакен, 1980). Математическим описанием синергетических систем подобного рода являются нелинейные параболические уравнения типа “реакция-диффузия”:

(1) dU/dt=F(U)+DDU,

U – вектор состояния элементарного объема возбудимой среды (для химической системы компоненты вектора состояния – это концентрации реагентов), матрица D определяет коэффициенты переноса (диффузии, инфильтрации), а нелинейная функция F(U) задает скорость химических реакций в элементарном объеме (заметим, что рассмотренный ранее процесс диффузии с переходом двухвалентного железа в трехвалентное есть частный случай системы (1), но без нелинейных членов). Тогда возможно возникновение предельных циклов в фазовом пространстве решений системы, что в реальном пространстве выглядит как попеременное увеличение и уменьшение концентраций веществ (Хакен, 1980). Кроме волновых режимов, в химических возбудимых средах возможно образование периодических в пространстве и неизменных во времени распределений концентраций – стационарных периодических структур. Условия их существования определяются соотношениями D и F(U) в системе (1). Так, если при изотропной диффузии имеются колебательные решения, то наличие предподчтительного направления переноса вещества создает условия для образования стационарной периодической структуры (Русинов, Жуков, 1994).

Нами проведено численное моделирование системы, описывающей перераспределение железа с извлечением его из ферросилита (Fs) и переотложением его в форме магнетита (Mt). Реально в моделируемом процессе должна образовываться масса разнообразнейших соединений железа с очень сложным составом; естественно, рассматриваемая модель в значительной степени – идеализация, однако, на наш взгляд, она отражает основные черты возможного протекания исследуемого процесса. В дальнейшем изложении мы обозначаем все комплексы, в которые входит блок [Fe2+2Fe3+] – Х, [Fe2+Fe3+] – Y, Fe2+ – Z, Fe3+ – R.

Ниже представлена модельная схема реакций; в скобках – кинетические константы прямой и обратной (если она предусмотрена схемой) реакций соответственно:

(2) Fs ®Z (k1)

Z «R (k2 k3)

Z+R «Y (k4 k5)

Y+R «X (k6 k7)

X ®Mt (k8)

X ®3R (k9)

Mt ®Z+2R (k10).

Принципиально возможность существования стационарных диссипативных систем в земной коре на основе железа обоснована В. Л.Русиновым и В. В.Жуковым (1994); ими показано, что геологические стационарные периодические структуры могут образовываться как при малых скоростях (u) линейного переноса вещества (фильтрации раствора) относительно скорости диффузии (D): u < 10D, так и в инфильтрационном приближении.

Предполагая, что все реакции комплексообразования равновесные, концентрации X и Y мы можем выразить через соответствующие константы равновесия и концентрации Z и R, тем самым упрощая схему (2). При этом вводятся новые кинетические константы:

k8*=(k4/k5)(k6/k7)k8;

k9*=(k4/k5)(k6/k7)k9.

Для предложенной схемы записываются следующие кинетические уравнения (для реакций, протекающих на поверхности минералов, кинетика пропорциональна степени 2/3 – отношение поверхности к объему):

dMt/dt= [k8* Z R2 — k10]Mt2/3

dFs/dt= &ndash; k1Fs2/3

dZ/dt=k1Fs2/3-k2 Z+k3 R – k9* Z R2 – [k8* Z R2 — k10]Mt2/3 +Dfe2D Z-u(¶Z/¶х)

dR/dt=k2 Z-k3 R + k9* Z R2 -2[k8* ZR2 — k10]Mt2/3 + Dfe3D R-u(¶R/¶х).

Рассматриваемая система численно исследовалась в одно – и двумерном варианте. Для численного исследования рассматриваемая система была приведена к безразмерному виду введением характерного времени Т и характерного размера L: t=t/Т, r=x/L, u=uT/L, Di=DiT/L2, и с соответствующей заменой Mt, Fs, Z, R, ki на их безразмерные аналоги Mt,Fs,Fe2+,Fe3+, ki.

На рис. 10 приведены результаты численного эксперимента в одномерном варианте с начальными условиями: t=0, r0 (0-30): Mt=0.1,Fs=0.9,Fe2+=1,Fe3+ =0; граничные условия: t>0, r=0: Fe2+=0,Fe3+=1; значения безразмерных констант: DFe2=0.1, DFe3=0.085, u=10, k1 =20, k2=1, k3=40, k8*=1, k9* =3, k10 =0.002. Видно, что с течением процесса из первоначально равномерного распределения всех переменных образуется стационарная периодическая структура концентраций R и Z (Fe2+ и Fe3+), что приводит к волновому характеру распределения образующегося магнетита.

Соответствие безразмерного пространства r пространству реальному задается скоростями взаимодействий и скоростью переноса вещества. Поэтому в условиях стресс-сдвиговой активации скоростей метаморфических процессов мы можем предположить увеличение характерного размера взаимодействий от первых сантиметров до сотен метров (пропорционально корню квадратному от приращения Di, ki), что будет соответствовать образованию в реальном геологическом пространстве рудных тел.

При переходе от одномерных моделей к двумерным сложность системы существенно возрастает. Объемная диффузия может способствовать появлению хаотических колебаний (и, как следствие, нерегулярных фрактальных структур) в системах, где без двух – трех-мерных эффектов возможны только периодические волны. В численных экспериментах на двумерной сетке с течением времени развивается структура распределения магнетита с неоднородностями не только вдоль вектора переноса вещества, но и перпендикулярно ему, причем распределение минимумов и максимумов концентраций не является периодическим, а масштабы флуктуаций значительно превышают заданные первоначальным распределением магнетита. При этом влияние первоначальных возмущений распространяется в пространстве; возможна потеря устойчивости процесса.

Рассмотренные нами численные эксперименты являются качественным описанием явления; это связано с тем, что на данном этапе развития науки мы можем только предполагать реальные значения констант, использованных при моделировании. Тем не менее, если автоволновые режимы детектируются в численных экспериментах, то, как правило, они реализуются в широком диапазоне констант (Хакен, 1980). Таким образом, за счет синергетических эффектов самоструктурирования может происходить сегрегация рудных тел и при равномерной инфильтрации окисляющего флюида, причем первоначальные малые флуктуации будут усиливаться, служа центрами роста рудных тел.

7. Заключение

Насколько применима изложенная выше генетическая концепция для построения генетических моделей других месторождений ПЖФ? В таблице 2 приводится сводка датировок докембрийских ПЖФ. Все содержащиеся в ней ПЖФ с возрастом моложе 2200 млн. лет являются в соответствии с классификацией Г. Гросса (Gross, 1990) формациями типа оз. Верхнее – безусловно, на наш взгляд, осадочными. Что же касается формаций типа Алгома (в большинстве своем архейских), то для многих из них и ранее выдвигались метаморфо-метасоматические генетические гипотезы. Так, еще в начале века метасоматические железистые кварциты были описаны в южной Финляндии П. Эскола (Escola, 1914), как метасоматические трактуются ряд месторождений Украинского щита (Щербак и др., 1990), Урала (Панков, 1984), Чарской зоны Восточной Сибири (Дэви, 1979), Костомукша (Барабанов, 1985).

Значение предлагаемой модели твердофазовой метаморфической дифференциации при стресс-метаморфизме, на наш взгляд, выходит за рамки проблемы генезиса ПЖФ. Так, Б. М.Чиков (1992) рассматривает как результат сдвигового стресс-структурирования многое полиметаллические, золоторудные и редкометалльные месторождения Казахстана, Рудного Алтая и других регионов. С учетом ограничений, которые накладывают на процессы, традиционно трактуемые как регионально-метасоматические, скорости диффузии в межзерновом пространстве и требующиеся для инфильтрации огромные массы флюида, процессы в атом-вакансионном состоянии вещества должны быть распространены в природе очень широко. Таким образом, как итог обсуждения конкретного механизма исследуемого процесса, формулируем следующий тезис: на примере ПЖФ Кольского полуострова предлагается петрологическая модель метаморфогенного рудообразования в зонах стресс-сдвиговых деформаций: при резком увеличении скоростей твердофазовых реакций с участием поливалентных химических элементов и водосодержащего флюида возникают геохимические стационарные диссипативные макро-структуры. Результатом этого является метаморфическая дифференциация с образованием зональной рудовмещающей породной ассоциации.

Для успешного размножения необходима встреча половозрелых и готовых к размножению самцов и самок на местах нереста. У большинства видов это обеспечивается образованием нерестовых стай, объединяющих особей разного пола и сходного физиологического состояния. У живущих одиночно рыб встреча партнеров и синхронизация их готовности к размножению обеспечивается разнообразными нерестовыми сигналами — звуковыми, оптическими, химическими, а у электрических рыб — и электрическими.

Как говорилось выше, у некоторых малоподвижных и одиночно живущих глубоководных рыб (удильщики — Ceratioidei) маленькие самцы паразитируют на самках, превращаясь, по сути, в придаток самки, вырабатывающий сперму. Наличие таких карликовых паразитических самцов обеспечивает размножение малочисленных, ведущих одиночный образ, жизни видов. Как дополнительную гарантию размножения можно рассматривать и гермафродитизм.

Осуществление нереста связано с наличием так называемых «нерестовых сигналов», непосредственно стимулирующих откладку икры и ее оплодотворение. К ним относятся ландшафтные особенности нерестилища (определенные грунты, наличие характерной водной растительности, температура, аэрированность воды и т. п.), состояние партнеров, готовых к размножению, в частности — их окраска и поведение. Существенную роль в синхронизации процессов нереста играют выделяемые в воду зрелыми самцами вещества — стимуляторы, особенно стерогормоны копулины. Они ускоряют готовность самок к выметыванию икры или к осеменению (у живородящих видов).

Недостаток мест, пригодных для нереста, может ограничивать размножение и рост численности многих видов. Зарегулирование стока и замедление течения при строительстве плотин гидроэлектростанций нередко ухудшают возможности размножения видов, нерестующих на песчаных или галечных перекатах, а слабое развитие водной растительности в молодых водохранилищах ограничивает возможности размножения рыб, выметывающих икру на растительность. Поэтому при рациональном рыбном хозяйстве необходимо уделять внимание устройству искусственных нерестилищ и мелиорации (улучшению) естественных. Недостаток естественных нерестилищ у некоторых проходных рыб компенсируется существованием «озимых» и «яровых» рас (некоторые осетровые, лососевые, карповые). Озимая раса входит в низовья рек осенью с еще незрелыми половыми продуктами, зимует там и весной, рано приходя на нерестилища, выметывает икру. Яровая раса входит в реки летом со зрелыми половыми продуктами, прямо идет на нерестилище и приступает к нересту позже озимой расы. Это дает возможность разным популяциям одного вида последовательно использовать одни и те же нерестилища. У части видов разделение на озимые и яровые расы позволяет увеличить количество используемых нерестилищ; озимая раса может дальше подняться вверх по реке и достигнуть нерестилищ в верховьях. Так, в р. Печору заходит преимущественно озимая раса семги, нерестящаяся в верховьях, а в мелкие речки Кольского полуострова, где подходящие для нереста места расположены недалеко от устья, — преимущественно яровая раса.

У большинства рыб с размножением связаны нерестовые миграции — переход с места нагула на места размножения. Нерестовые миграции составляют часть годового биологического цикла; степень их выражения у разных видов различна. У многих пресноводных (щука, окунь, пескари и пр.) и оседлых морских рыб (бычки, коралловые рыбы и др.) протяженность нерестовых миграций невелика и измеряется сотнями метров или немногими километрами. Некоторые морские рыбы совершают кочевки в сотни и тысячи километров (сельди, тресковые, морские окуни и др.). Так, норвежская сельдь нерестует у берегов южной Норвегии и уходит для нагула к северу, возвращаясь на нерест в следующем году. Вылупившаяся из икры молодь Атлантическим течением уносится на северо-восток. Еще незрелые сельди начинают медленно двигаться к югу, ежегодно приближаясь к берегам и отходя в открытое море. Достигнув ко времени подхода к нерестовому району половой зрелости (в возрасте 5 лет), они нерестятся и уходят для нагула на север и восток, вновь возвращаясь сюда лишь на следующий год. Миграции проходных рыб, идущих для икрометания из морей в реки (осетровые, лососевые) или из рек в море (речной угорь), имеют протяженность в сотни и тысячи километров.

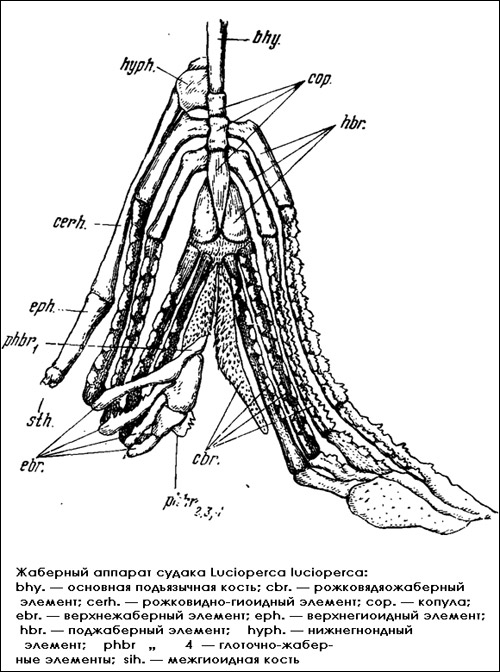
Жаберный аппарат судака (Lucioperca lucioperca), Рисунок картинка
Жаберный аппарат судака (Lucioperca lucioperca)

Нерестовые миграции облегчают встречу половозрелых особей и обеспечивают возможность выметывания икры и развитие личинок и мальков в наиболее благоприятных условиях, повышающих их выживаемость. Места нереста многих видов рыб отличаются от мест их пребывания в остальное время года (места нагула) прежде всего благоприятными условиями для развития икры (подходящий субстрат, оптимальные температуры, достаточное содержание кислорода) и меньшим числом врагов. Обособление мест нагула и мест нереста расширяет использование видом среды, обеспечивая оптимальные условия для разных возрастных групп с их неодинаковыми потребностями. Некоторые морские виды (сельдь черноспинка и др.), видимо, раньше нерестившиеся, как и их родичи, в морях, постепенно перешли к нересту в реках, где меньше врагов, сохранив места нагула в море. Лососевые, некоторые карповые и осетровые рыбы, видимо, первоначально были пресноводными, а затем, сохранив места нереста в реках, переменили места нагула на более кормные в морях. Речные угри, наоборот, для нереста уходят в море. Некоторые морские глубоководные рыбы для икрометания поднимаются в поверхностные слои, где вылупившаяся молодь лучше обеспечена кормом. Такие вертикальные нерестовые миграции совершают и байкальские голомянки.

Центральная нервная система и органы чувств. У костных рыб относительные размеры головного мозга в большинстве случаев крупнее, чем у хрящевых рыб. В то же время основные функции разных отделов головного мозга в обоих классах, по существу, одинаковы. Передний мозг (telencephalon) костных рыб относительно невелик. Главную его массу составляют полосатые тела (corpora striata); нервные клетки в крыше переднего мозга отсутствуют или образуют лишь незначительные скопления (осетрообразные). Промежуточный мозг (diencephalon) довольно велик; на его спинной стороне образуется хорошо развитый эпифиз, а на брюшной стороне — гипофиз. Зрительные нервы образуют отчетливый перекрест (хиазму). Средний мозг (mesencephalon) у большинства костных рыб по размерам заметно превышает остальные отделы мозга и прикрывает промежуточный мозг. Сверху он подразделен на две зрительные доли, в которых оканчиваются волокна зрительного нерва; там проходит обработка зрительных восприятий. В брюшной части среднего мозга сосредотачиваются центры связи с мозжечком, продолговатым и спинным мозгом, в которых осуществляется суммация и сопоставление восприятий. У подвижных видов рыб мозжечок (cerebellum) хорошо развит, он частично налегает на средний мозг и почти полностью прикрывает продолговатый мозг. У малоподвижных рыб относительные размеры мозжечка уменьшаются. Осуществляя взаимодействие восходящих путей спинного и продолговатого мозга и нисходящих путей среднего мозга, мозжечок обеспечивает контроль над тонусом соматической мускулатуры, координацией движения и сохранением равновесия. Продолговатый мозг (myelencephalon seu medulla oblongata) по форме, относительным размерам и функции сходен с продолговатым мозгом хрящевых рыб.

У двоякодышащих, кистеперых и многоперообразных рыб пропорции отделов головного мозга отличаются от описанных выше и характерных для остальных костных рыб. Передний мозг у них крупнее остальных отделов; он разделяется на правое и левое полушария. В области желудочков нервные клетки подстилают крышу полушарий. Средний мозг и мозжечок имеют относительно небольшие размеры. Эти отличия, видимо, связаны с большей ролью обоняния, по сравнению со зрением, и малой подвижностью этих рыб.

Как и у хрящевых, от головного мозга костных рыб отходит 10 пар головных нервов.

Спинной мозг (medulla spinalis) костных рыб по строению сходен со спинным мозгом хрящевых рыб. Он лежит в канале, образованном верхними дугами позвонков. Автономность функционирования спинного мозга у костных рыб выражена слабее, чем у хрящевых рыб.


    Млекопитающие


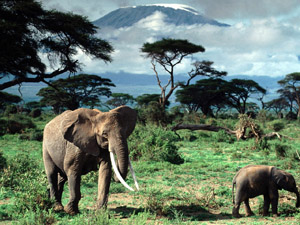
    Слоны

    Птицы


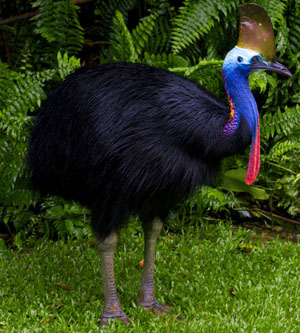
    Самка казуара

    Пресмыкающиеся и земноводные


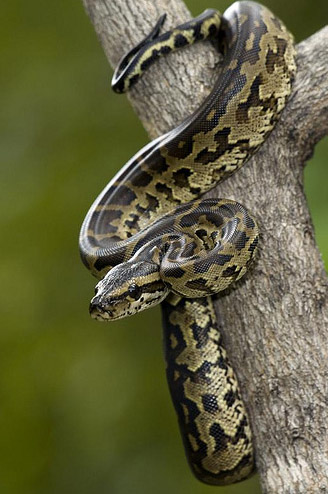
    Питон

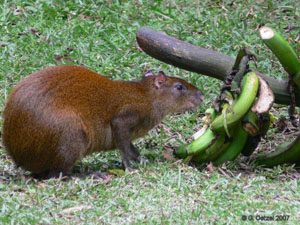
    Агути


    Агути

    Антилопы


    Антилопа